전체 글 92

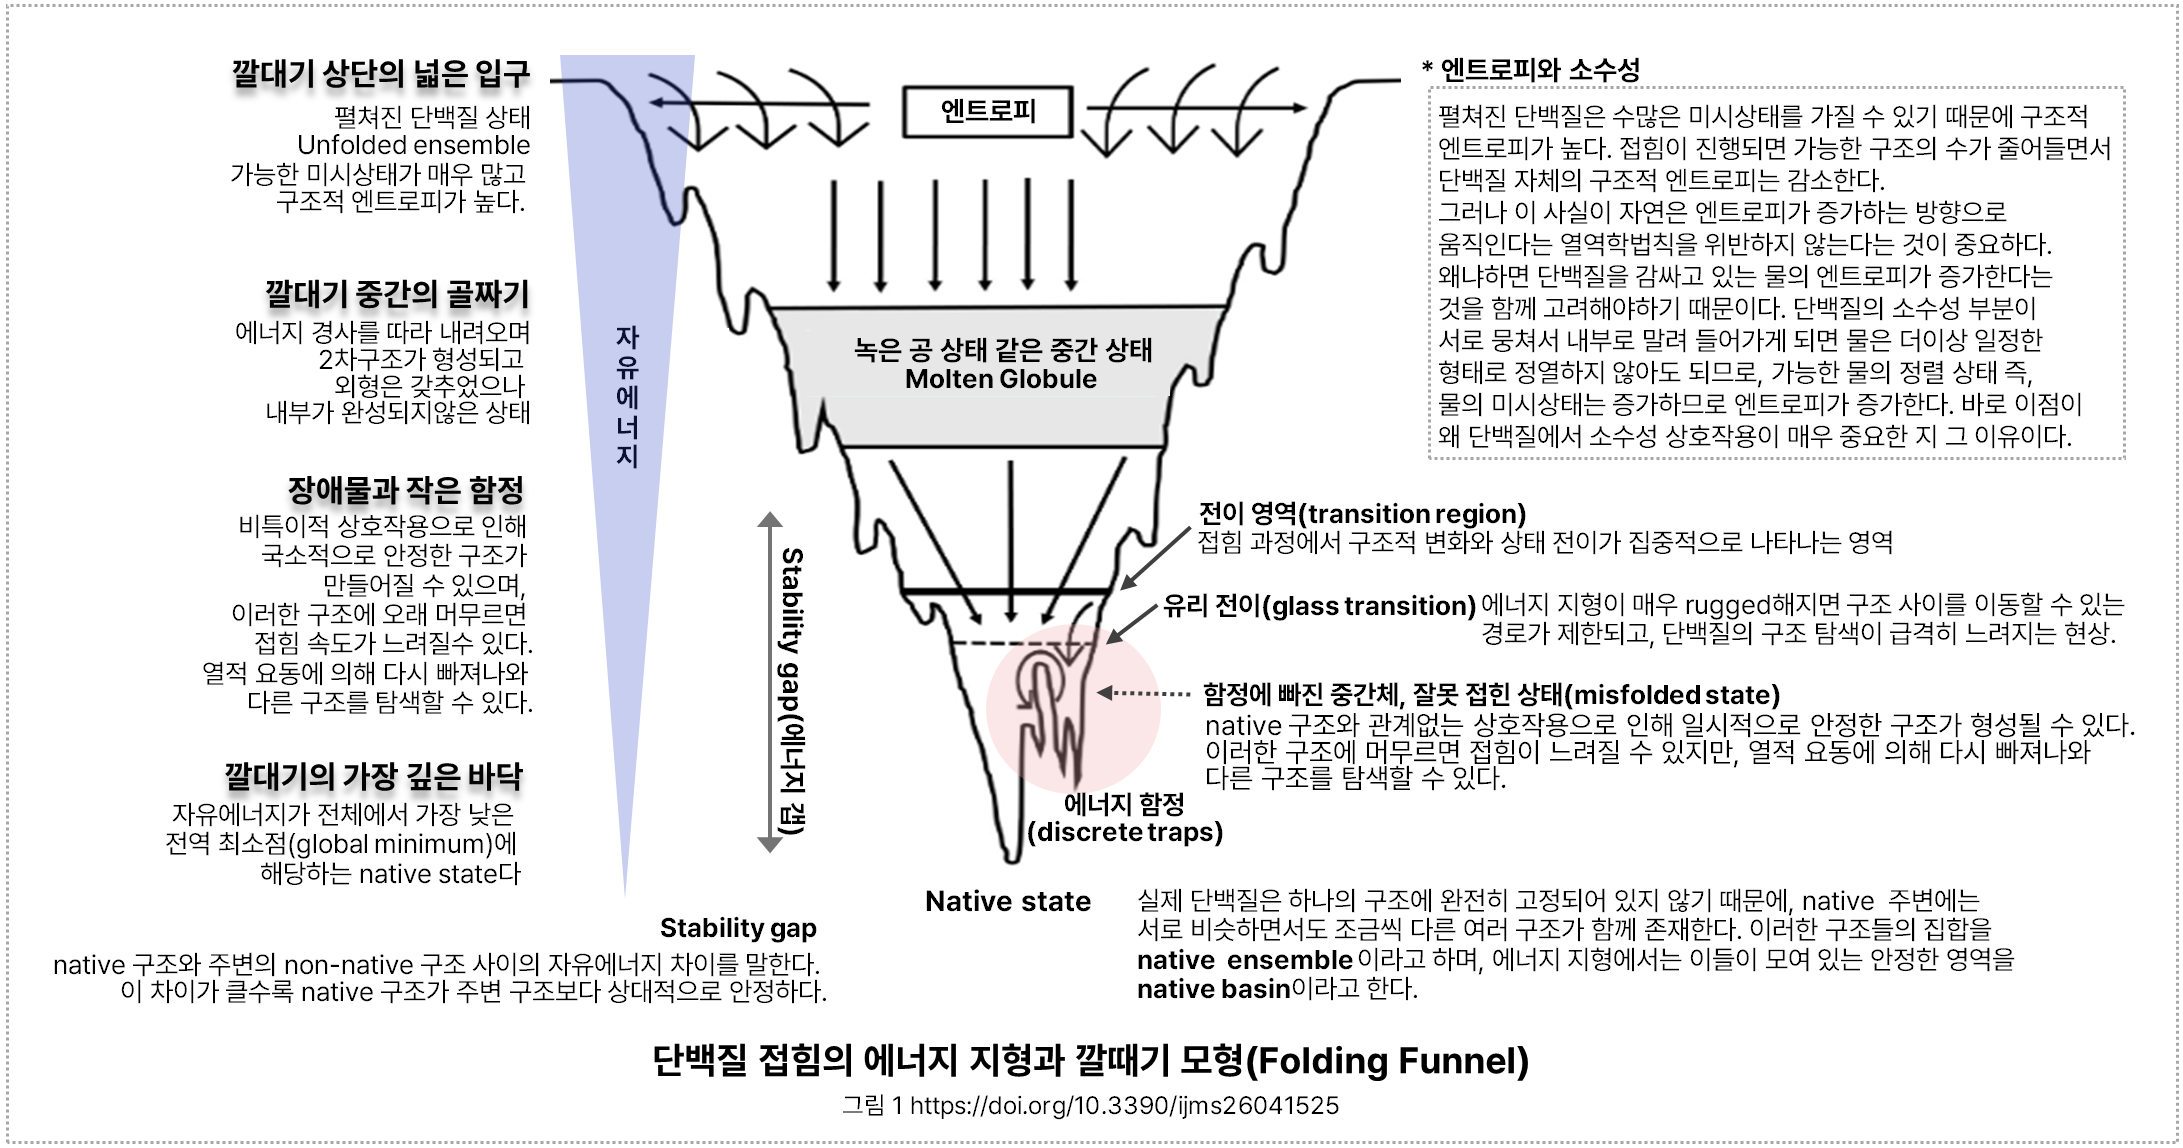
단백질 6: 단백질 접힘, 이론에서 현실로 - 에너지 지형과 Folding@home

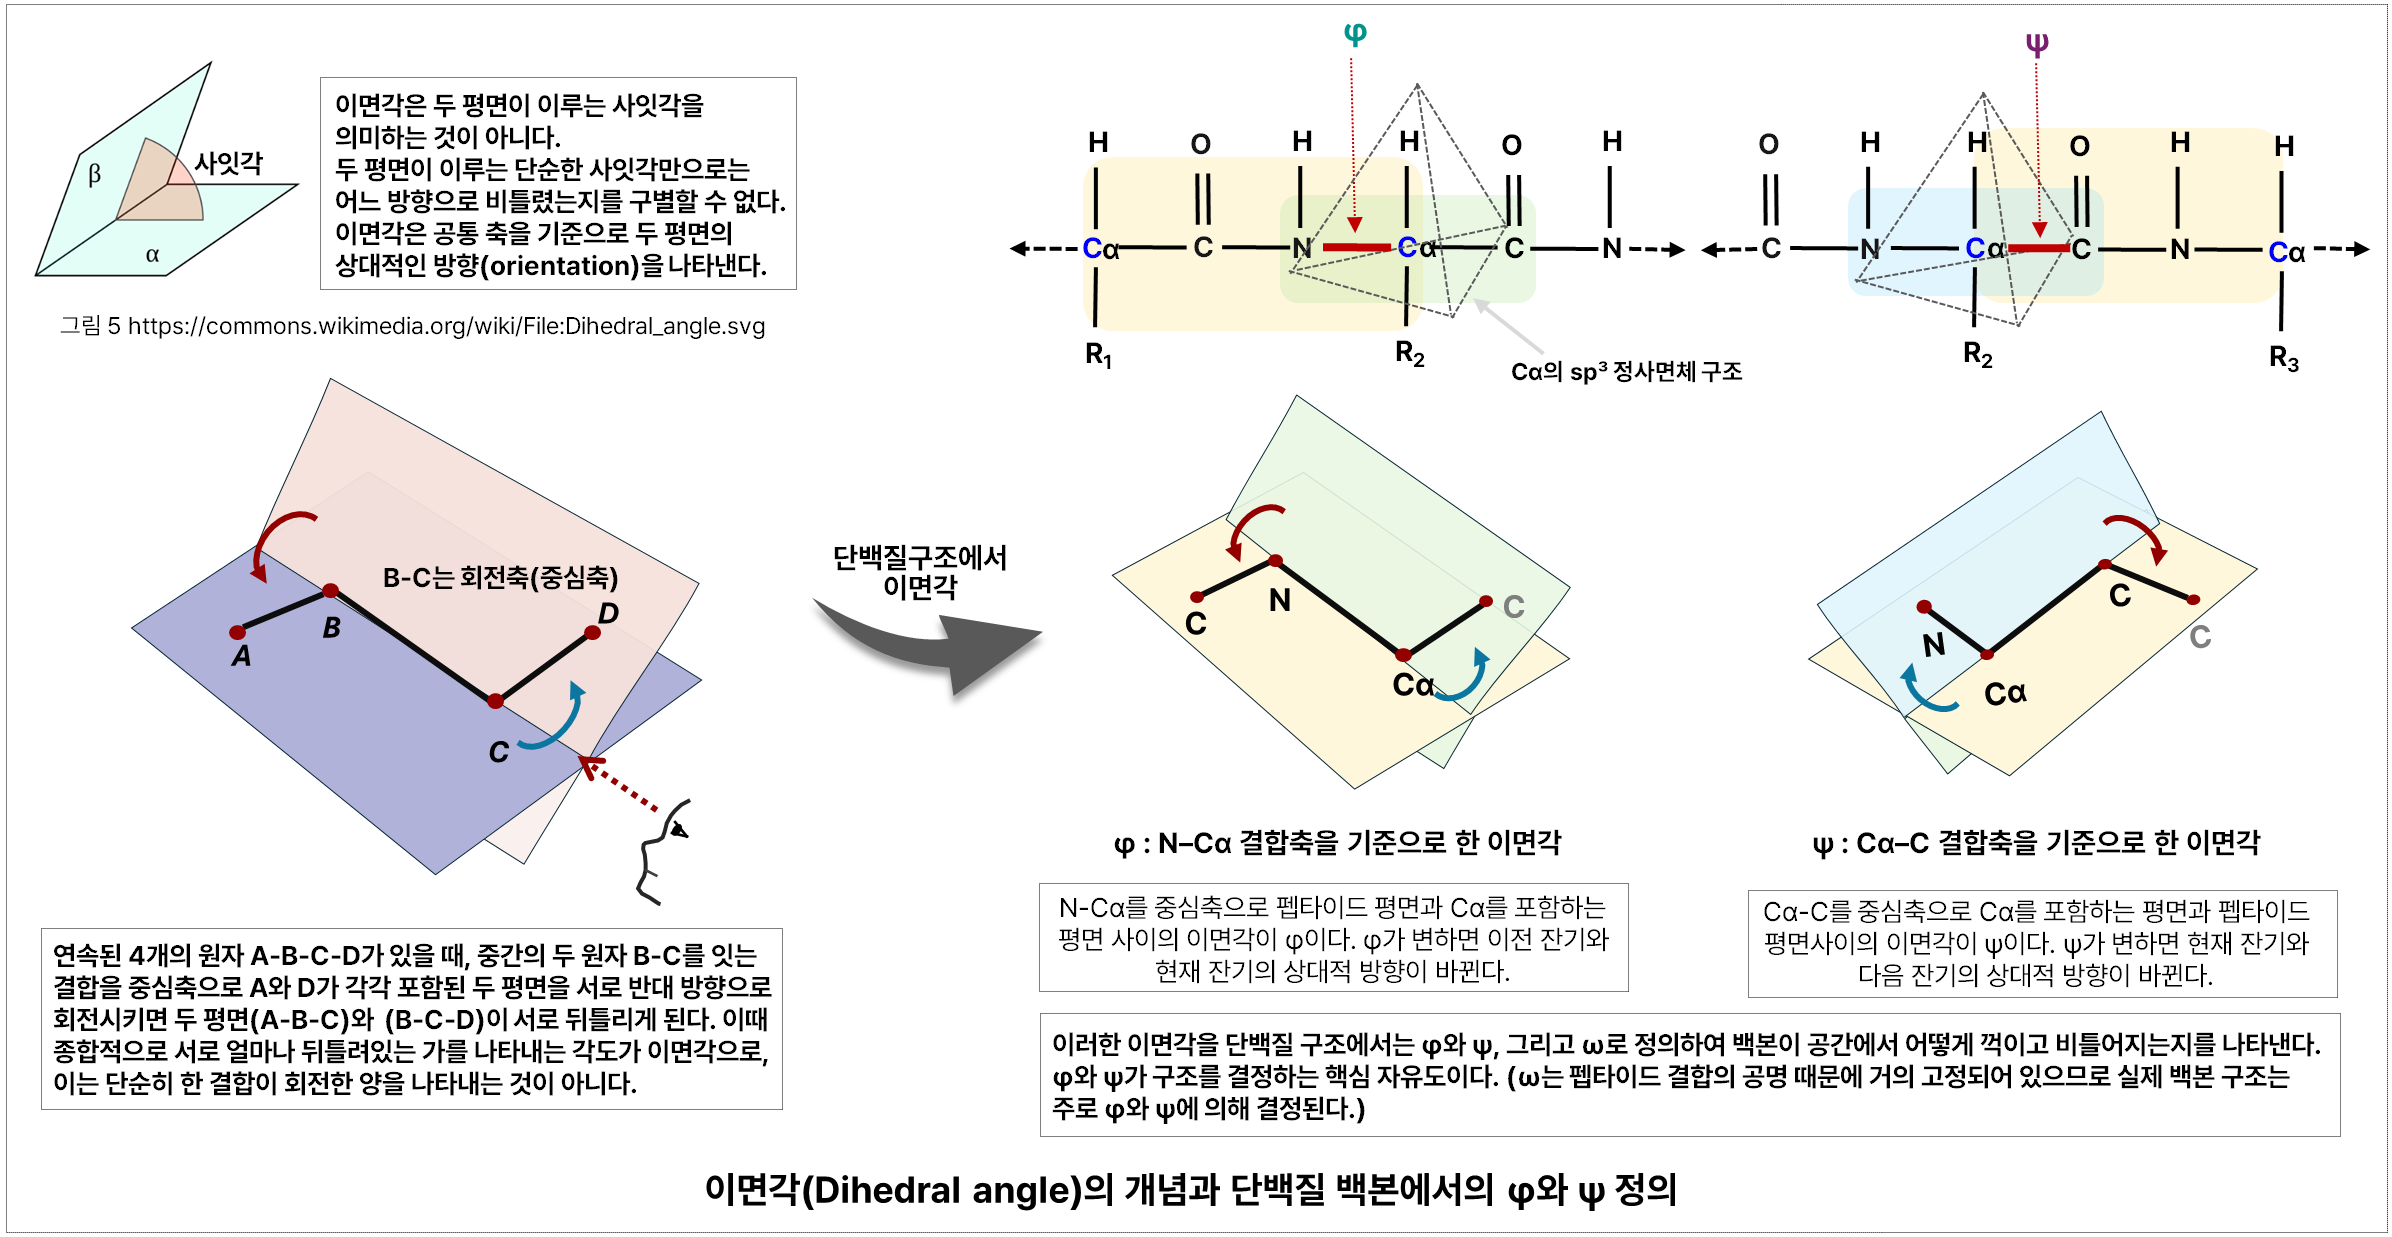
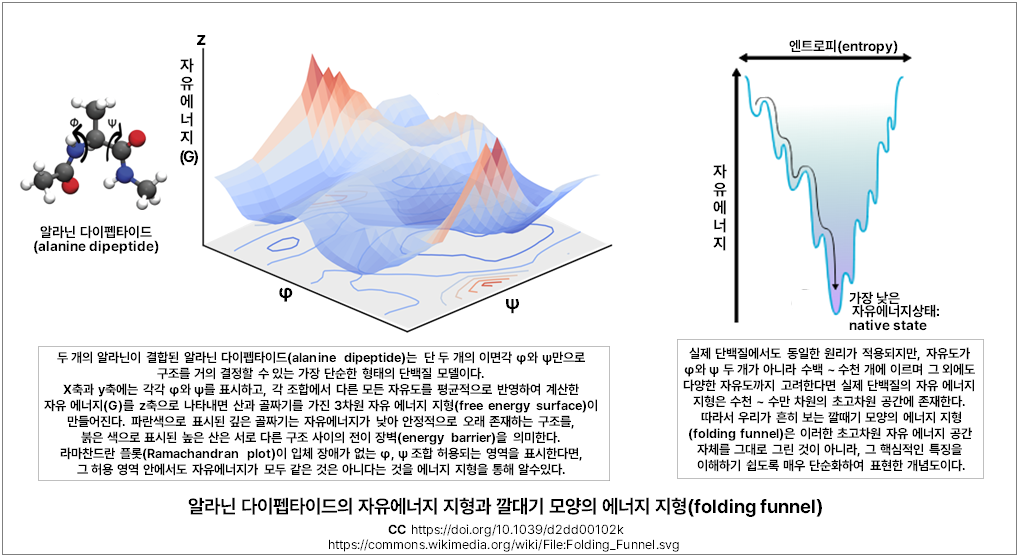
우리는 단백질의 구조를 이해하기 위한 앞의 여러 글들을 통해, 두 아미노산이 펩타이드 결합을 이룬 부위는 공명효과로 인해 회전이 거의 일어나지 않는 뻣뻣하고 단단한 평면을 이루지만, 그 평면과 아미노산 중앙의 알파탄소(Cα)를 연결하는 앞뒤의 단일결합은 회전이 가능하다는 것을 살펴보았다. 이렇게 회전이 가능한 두 각 즉, 각각 φ(phi)와 ψ(psi)라고 불리는 이면각(dihedral angle)들은 쉽게 말해 단백질의 백본이 어느 방향으로 꺾이고 비틀릴 수 있는지를 정하는 기본적인 회전각이라고 할 수 있다. 따라서 이 두 이면각의 조합이 달라지면서 단백질 백본은 매우 다양한 입체구조를 만들 수 있다. 이론적으로는 수많은 φ와 ψ의 조합이 가능해 보인다. 하지만, 실제 단백질 내부에서는 원자들이 서로 ..
단백질 5: 단백질 접힘 - Anfinsen, Levinthal을 거쳐 Gibbs의 자유에너지

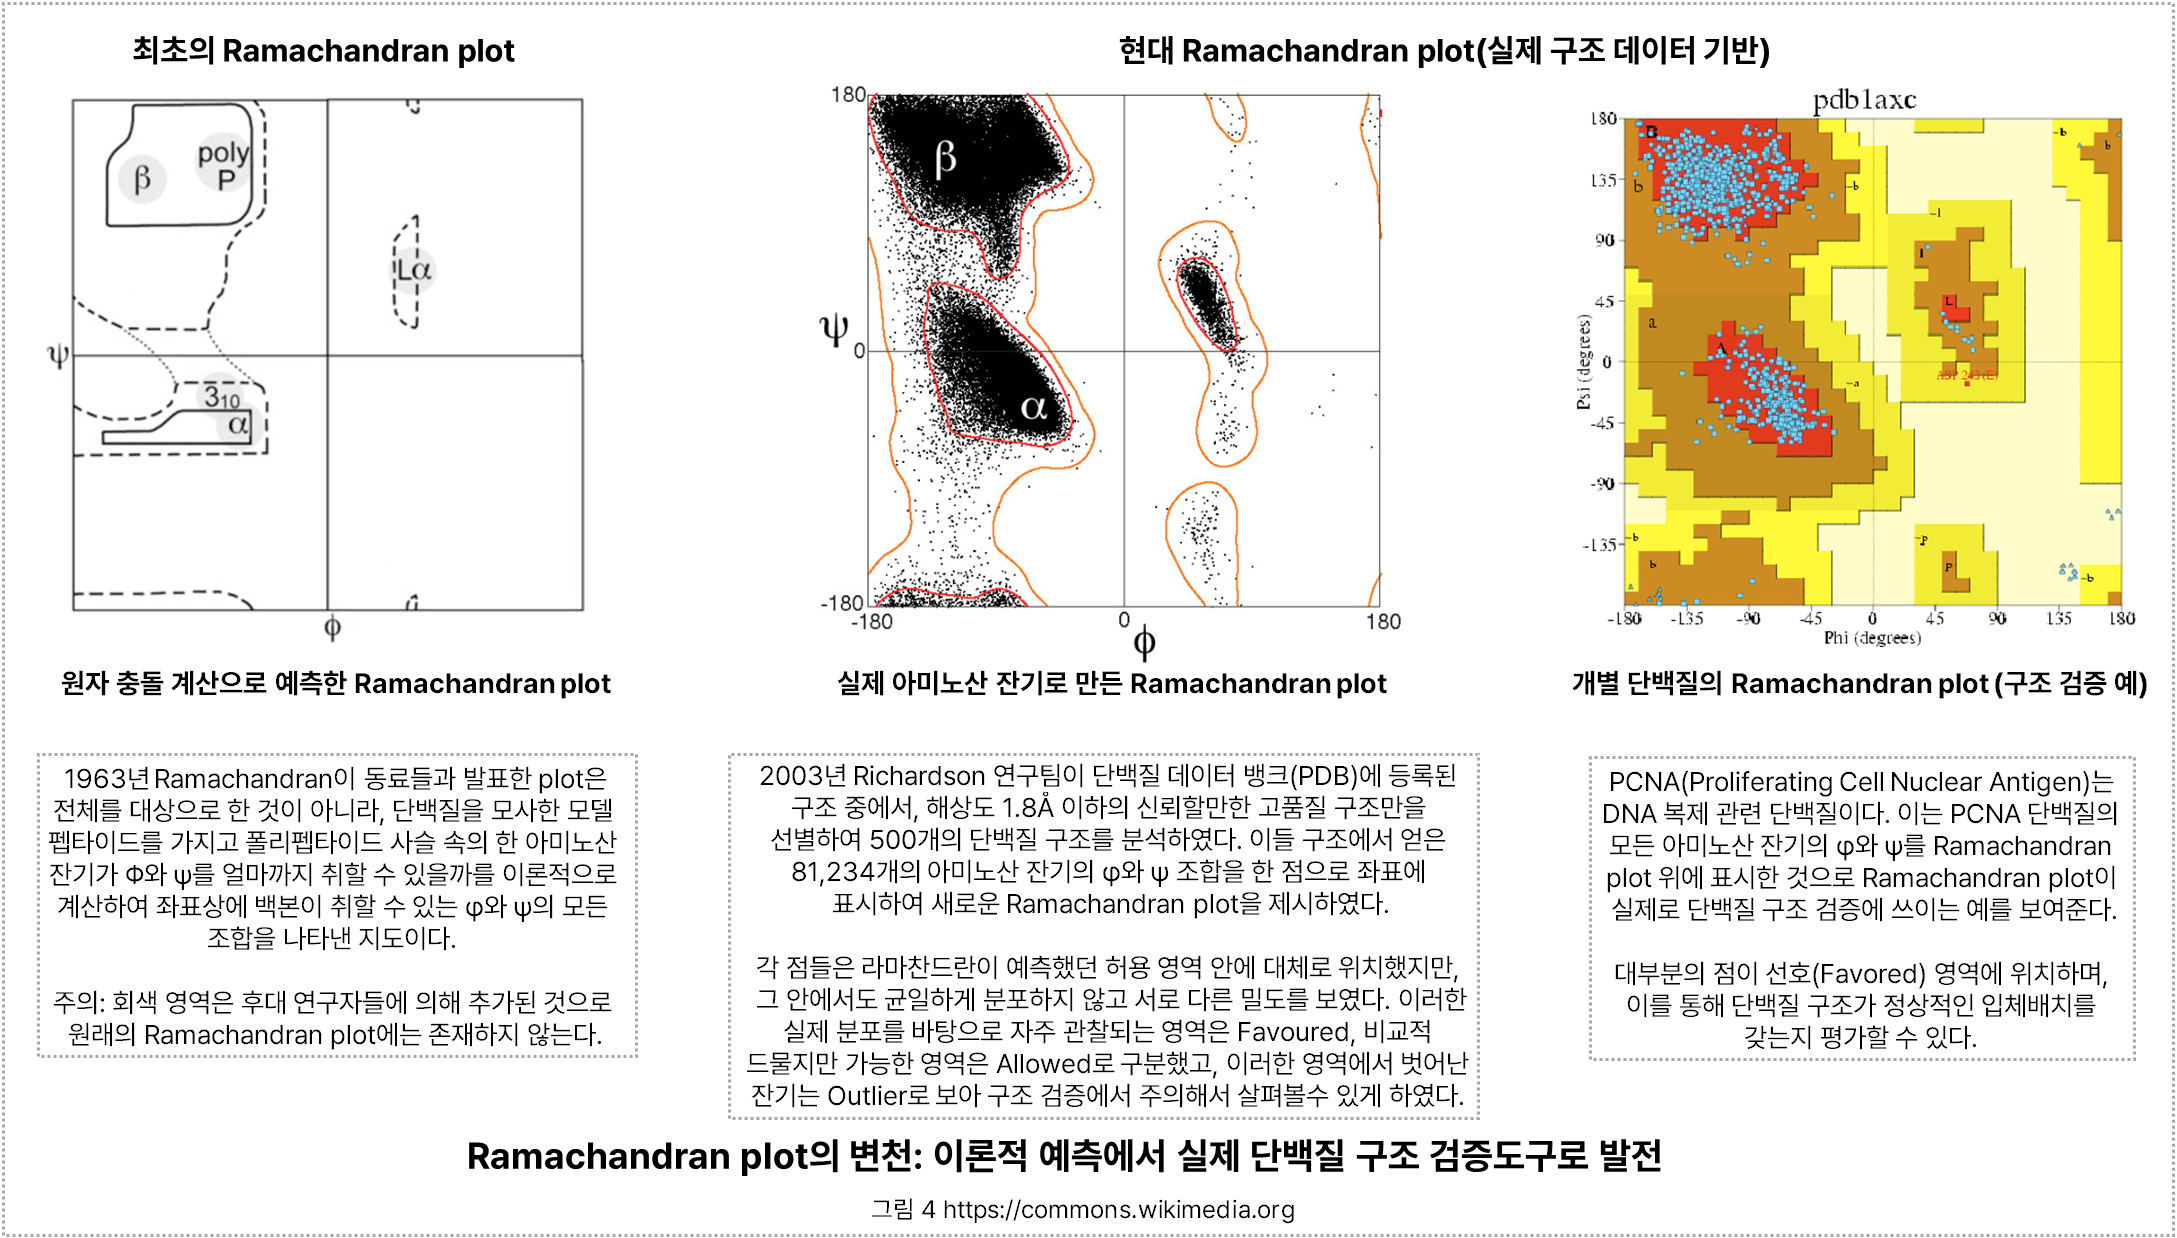
Ramachandran plot: 단백질이 취할 수 있는 구조에는 한계가 있다 앞 글에서 Ramachandran plot이 역사적으로 어떻게 만들어져 왔고 어떻게 오늘날에도 유용하게 쓰이고 있는지 살펴보았다. 무엇보다도 라마찬드란은 일일이 계산을 통해서 입체 장애로 인해 단백질 백본이 취할 수 있는 두 이면각 φ과 ψ 조합이 실제로 상당히 제한적이라는 것을 보여주었다. 즉, 단백질이 물리적으로 취할 수 있는 구조는 애초에 극히 일부에 불과하며 따라서 처음부터 입체적으로 허용되지 않는 구조가 상당 부분 걸러지기 때문에 단백질이 접힐 때 실제로 가능한 모든 입체구조를 무작위로 다 탐색하는 것은 아니라는 중요한 단서를 제공했다. 그러나 이것만으로는 단백질 접힘을 완전히 설명하기에는 턱없이 부족하다. 입체 장애..

열역학 2: 볼츠만 통계역학과 깁스 자유에너지로 보는 단백질 접힘

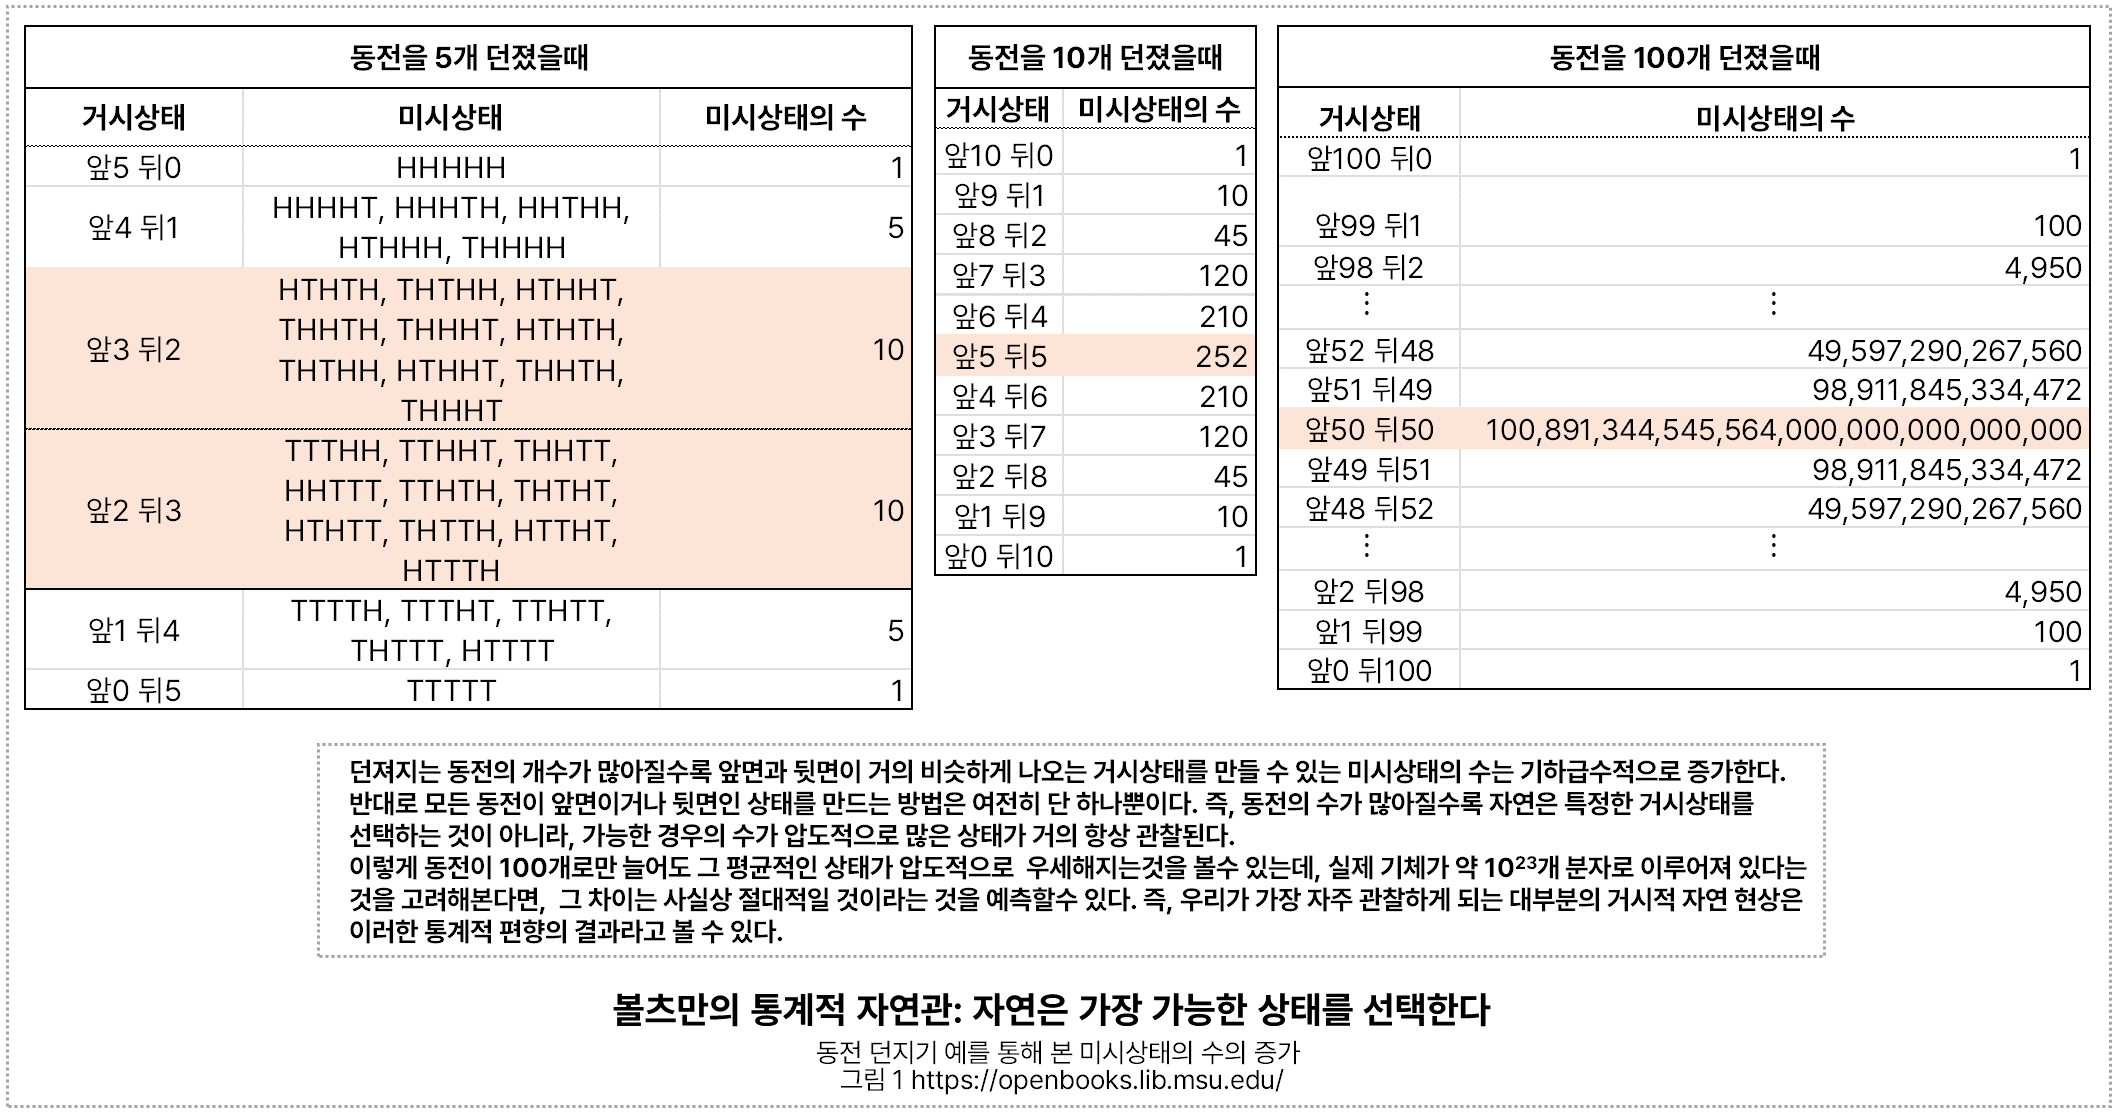
앞선 글에서는 열역학이 에너지 보존에서 출발해 엔트로피와 자연의 방향성이라는 문제로 이어지는 과정을 살펴보았다. 이제 그 마지막에 남았던 질문, “왜 자연은 엔트로피가 증가하는 방향으로 흘러가는가?”에서 다시 시작해 보자.볼츠만: 미시의 세계를 통해 엔트로피를 설명하다.클라우지우스는 엔트로피를 수학적으로 정의하고, 열역학 제2법칙을 통해 자연에서 일어나는 과정의 방향성을 정량적으로 표현했다. 그러나 여전히 자연은 왜 엔트로피가 증가하는 방향으로 진행되는 것처럼 보이는지를 설명하지 못했다. 그리고 이 질문에 새로운 관점을 제시한 사람이 바로 오스트리아의 물리학자 루트비히 볼츠만(Ludwig Boltzmann)이었다. 클라우지우스가 거시적인 현상을 열역학의 언어로 기술했다면 볼츠만은 그 거시적인 법칙을 만들..

열역학 1: 열역학 제1,2,3 법칙과 엔탈피 그리고 엔트로피의 탄생

앞선 글에서는 단백질의 3차원 구조를 이해하기 위해 Ramachandran plot을 살펴보았다. 그런데 이제 단백질이 실제로 어떻게 접히고, 수많은 가능한 구조 가운데 왜 특정한 구조를 선택하는지를 이해하려고 하다 보니 결국 피할 수 없는 문제가 하나 나타났다. 바로 열역학이다. 솔직히 말하면 열역학은 가능하면 피해 가고 싶은 주제였다. 수식도 많고, 엔트로피나 자유에너지 같은 개념은 이름부터 만만하지 않다. 하지만 이 글 다음에 다룰 단백질 에너지 지형(protein energy landscape)을 제대로 이해하려면 결국 이 길을 한 번은 지나가야만 한다. 그래서 다소 도살장에 끌려가는 기분으로, 이번에는 열역학의 기본 개념이 어디에서 시작되었고 어떻게 발전했는지를 먼저 살펴보려 한다. 미리 밝혀..

단백질 4: 단백질 접힘 - Ramachandran Plot의 역사적 변천

앞글에서는 펩타이드 결합이 이루어지면 공명 구조(resonance)를 가지게 되어 매우 안정적인 상태가 되며, 공명구조로 인해 질소와 탄소 사이에 결합이 부분적인 이중 결합 성격을 갖게 되면서 회전이 거의 일어나지 않는다는 사실을 자세히 살펴보았다. 즉, 공명구조로 펩타이드 결합이 마치 단단한 판자처럼 평면성을 갖게 되었기에 이러한 평면 구조가 반복되는 α-helix와 β-sheet와 같은 규칙적인 2차 구조가 형성될 수 있는 중요한 발판이 된다는 것도 살펴보았다. ​ 하지만 이것만으로는 단백질의 구조를 설명할 수 없다. 단백질 사슬은 단단한 평면들이 늘어서서 이어진 막대가 아니라 각 평면들은 평면을 서로 연결하는 관절을 중심으로 계속 방향을 바꾸며 공간속에서 다양한 형태를 만들어간다. 펩타이드 결합 자..

단백질 3: 공명구조가 만드는 펩타이드 평면과 단백질 백본의 φ, ψ 이면각

앞 글에서는 평온하게 안정된 상태를 유지하고 있던 자유 아미노산을 끌어와 단백질을 만드는 재료로 사용하고, 이들을 차곡차곡 연결해 하나의 펩타이드 사슬을 만들기 위해 어떤 화학적 준비 작업과 연결 작업이 필요한지를 살펴보았다. 그렇다면 그렇게 힘들게 만들어진 펩타이드 결합은 단순히 아미노산들을 이어 놓은 사슬의 연결고리로 끝나는 것일까? 이제는 시선을 결합을 만드는 과정에서, 만들어진 펩타이드 결합이 가져오는 결과로 옮겨보자. 무엇보다 펩타이드 결합으로 형성되는 공명구조는 단백질 구조에 매우 중요한 영향을 끼치게 된다. 이로 인해 단백질이 취할 수 있는 구조가 어떻게 제한되는지, 그리고 그 제한 속에서도 어떻게 다양한 구조가 가능해지는지까지 이어서 살펴보자. 펩타이드 결합은 단순히 아미노산을 연결하는 ..

단백질 2: 단백질 번역-생체 내 펩타이드 결합(아미노산 활성화에서 펩티딜 전이까지)

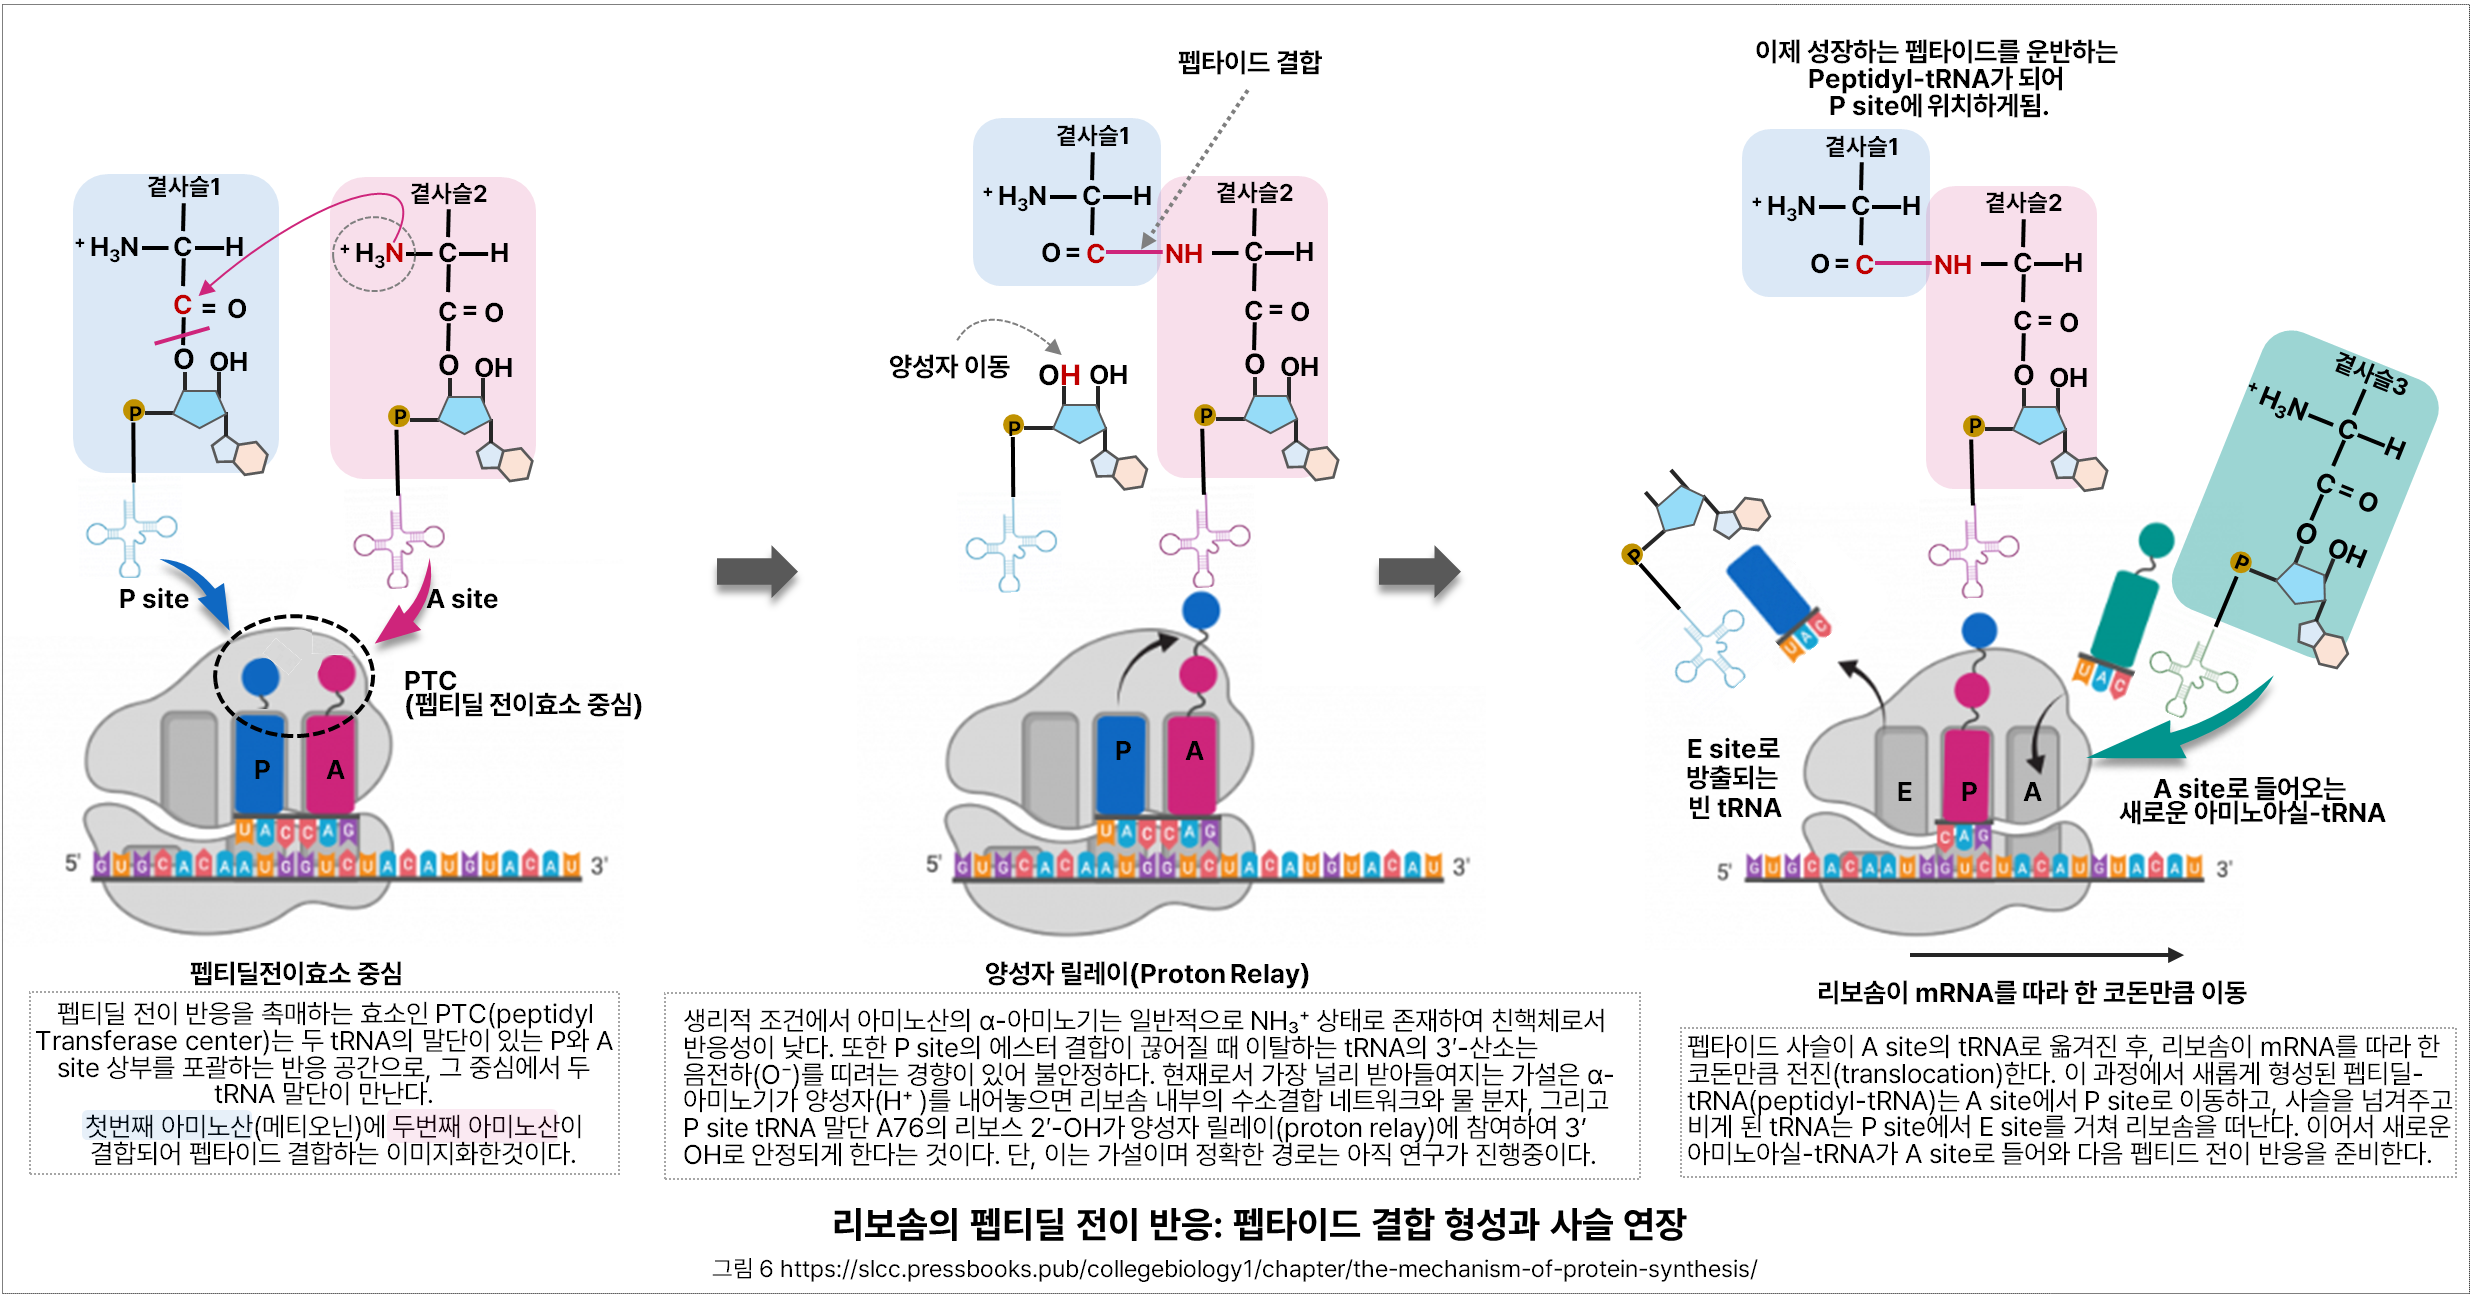
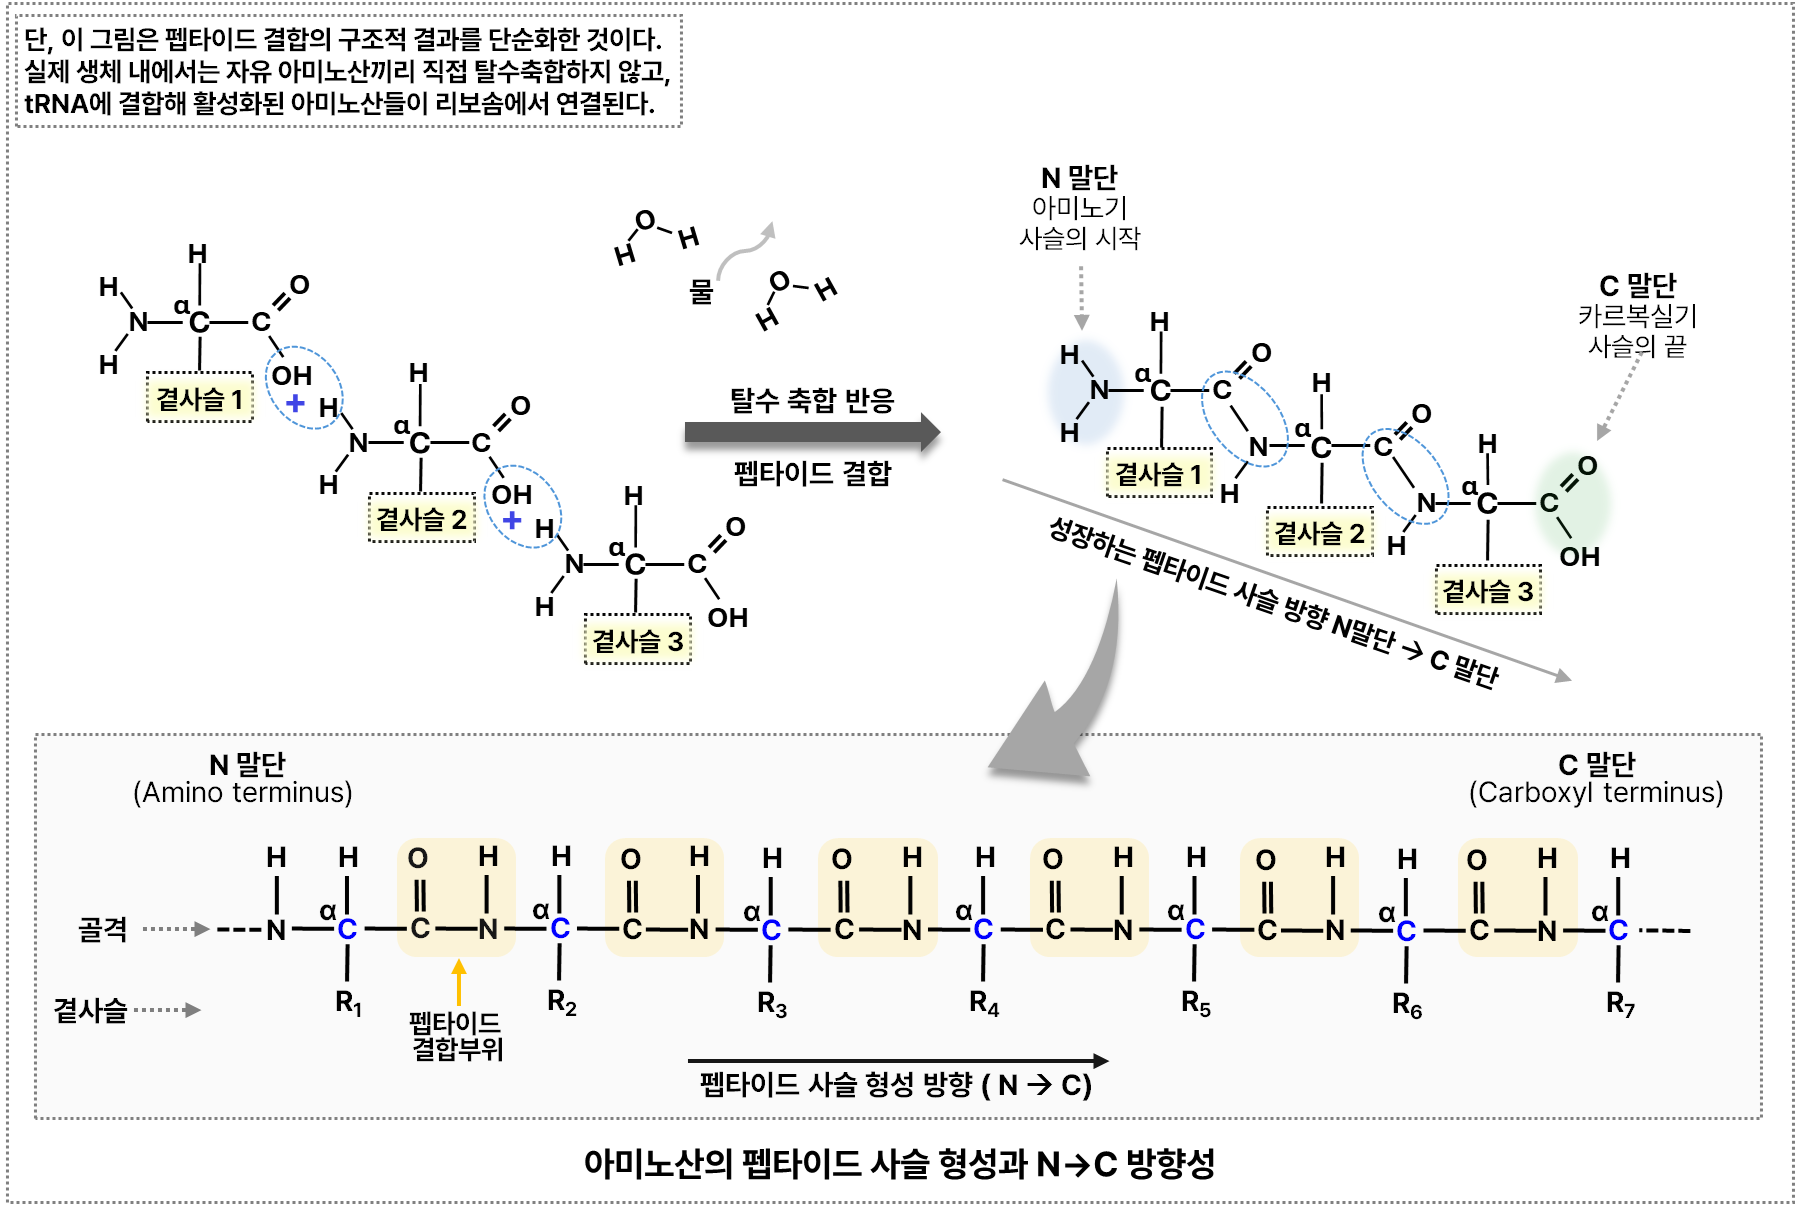
앞 글에서는 단백질을 만드는 기본 재료인 아미노산부터 시작해, 아미노산들이 펩타이드 결합으로 연결되어 사슬을 만든다는 데까지 살펴보았다. 그리고 이 결합을 제대로 이해하기 위해 에스터와 아마이드, 아실기와 아실화라는 기본적인 화학 개념도 함께 들여다보았다. 특히 생체 내에서 안정한 카르복실산이 다른 분자와 새로운 결합을 만들려면 먼저 더 반응성이 높은 형태로 활성화되는 과정이 필요하다는 데까지 왔다. 그렇다면 실제 세포에서는 아미노산을 어떻게 활성화하고, 어떻게 연결하여 하나의 펩타이드 사슬을 만들어내는 것일까? 이제 그 과정을 조금 더 깊이 따라가 보자. 펩타이드 결합은 과연 단순한 탈수축합반응인가일반적으로 펩타이드 결합을 두 아미노산의 아미노기(NH₂)와 카르복실기(COOH)가 반응하여 물 분자(H₂..

단백질 1: 단백질 생성 아미노산

바로 앞에서 DNA와 RNA라는 핵산을 13개의 글에 걸쳐 무척이나 자세히 살펴보았다. 그 바통을 이어 이번에는 단백질을 아주 깊게 다뤄보려고 한다. 여기에는 내 나름의 이유가 있다. 나는 요즘 말로 후생유전학이라는 분야에 무척이나 꽂혀 있다. 같은 DNA 세트를 가지고 태어났어도 그 DNA에 담긴 유전자들이 실제로 어떻게 발현되는지는 완전히 고정되어 있는 것이 아니며, 환경과 생활습관을 비롯한 여러 요인이 어느 정도 영향을 줄 수 있다는 사실이 정말 매력적이지 않은가. 물론 우리가 마음대로 유전자 발현을 조종할 수 있다는 뜻은 전혀 아니지만, 그 작은 여지만으로도 나를 흥분시키기에는 충분하다. ​ 후생유전학을 이해하기 위해 먼저 핵산에 대해 집중적으로 살펴본 것이고, 이번에는 그 바통을 이어 단백질을 ..

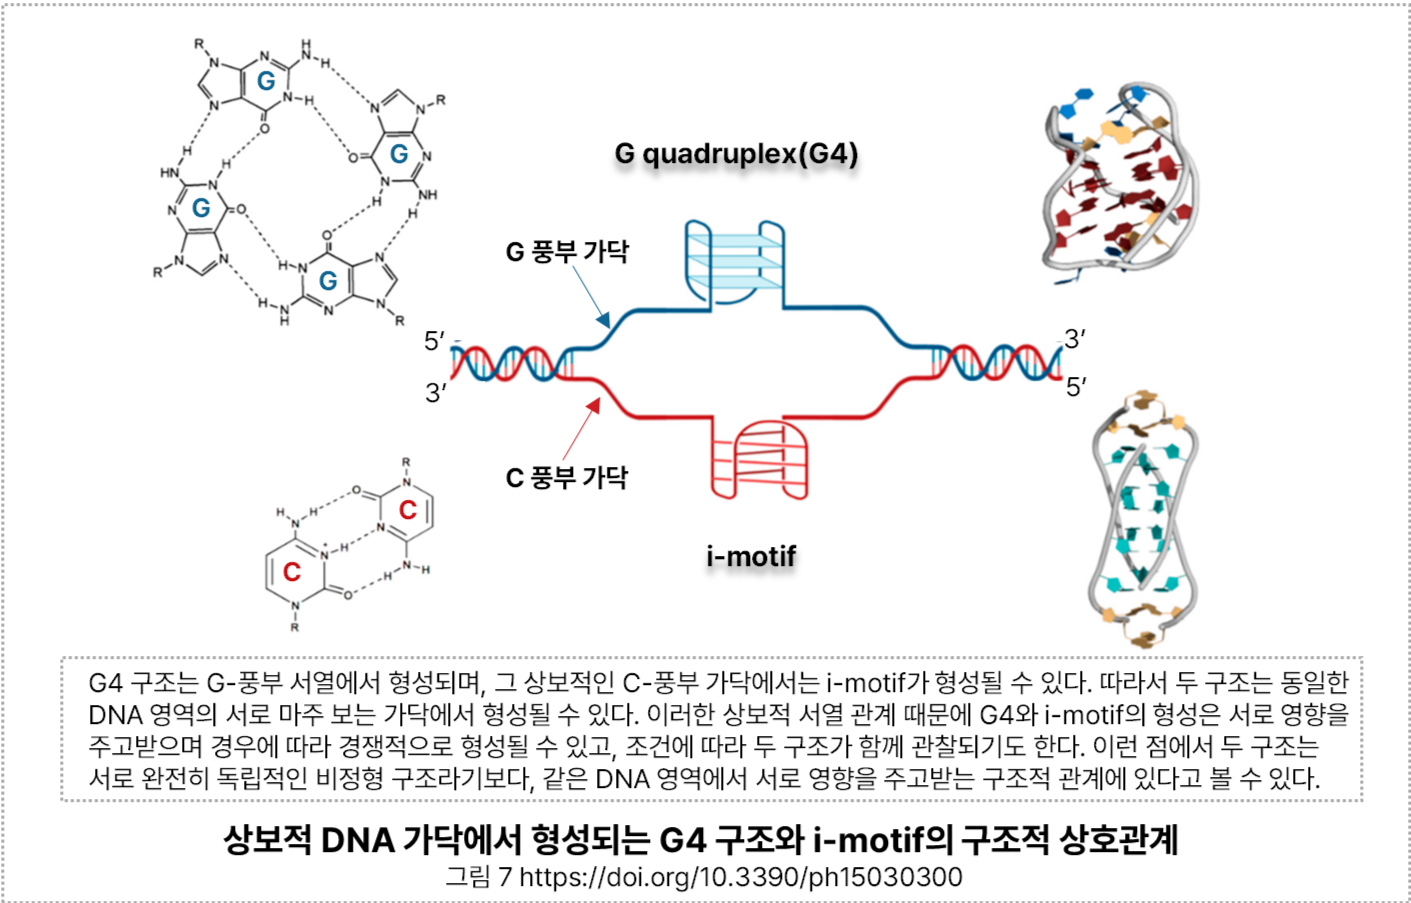
핵산 13: 비정형 DNA 구조(3): G-quadruplex(G4)와 i-motif 구조

DNA라고 하면 가장 먼저 떠오르는 이미지는 누가 뭐래도 역시 이중 나선이다. 두 가닥이 서로를 감싸며 길고 길게 뻗어 있는 모습이야말로 우리에게 너무나 익숙한 DNA의 상징이기도 하다. 하지만 이제 우리는 DNA가 이 상징적인 모습 외에도 필요에 따라 굽어지고 비틀리며 A-DNA나 Z-DNA와 같은 다른 형태를 취하기도 하고, 특정한 반복서열에서는 hairpin이나 cruciform처럼 불룩 튀어나온 특이한 구조를 만들기도 한다는 것을 알게 되었다. 그래도 이들은 모두 두 가닥의 DNA라는 기본적인 틀 안에 안에서 이루어지는 이유 있는 변신이었다. 그런데 3중 나선부터는 이야기가 조금 달라졌다. 좀 더 복잡하고 파격적이다. 기존 이중 나선의 major groove에 제3의 가닥이 들어와 후그스틴 결합을..

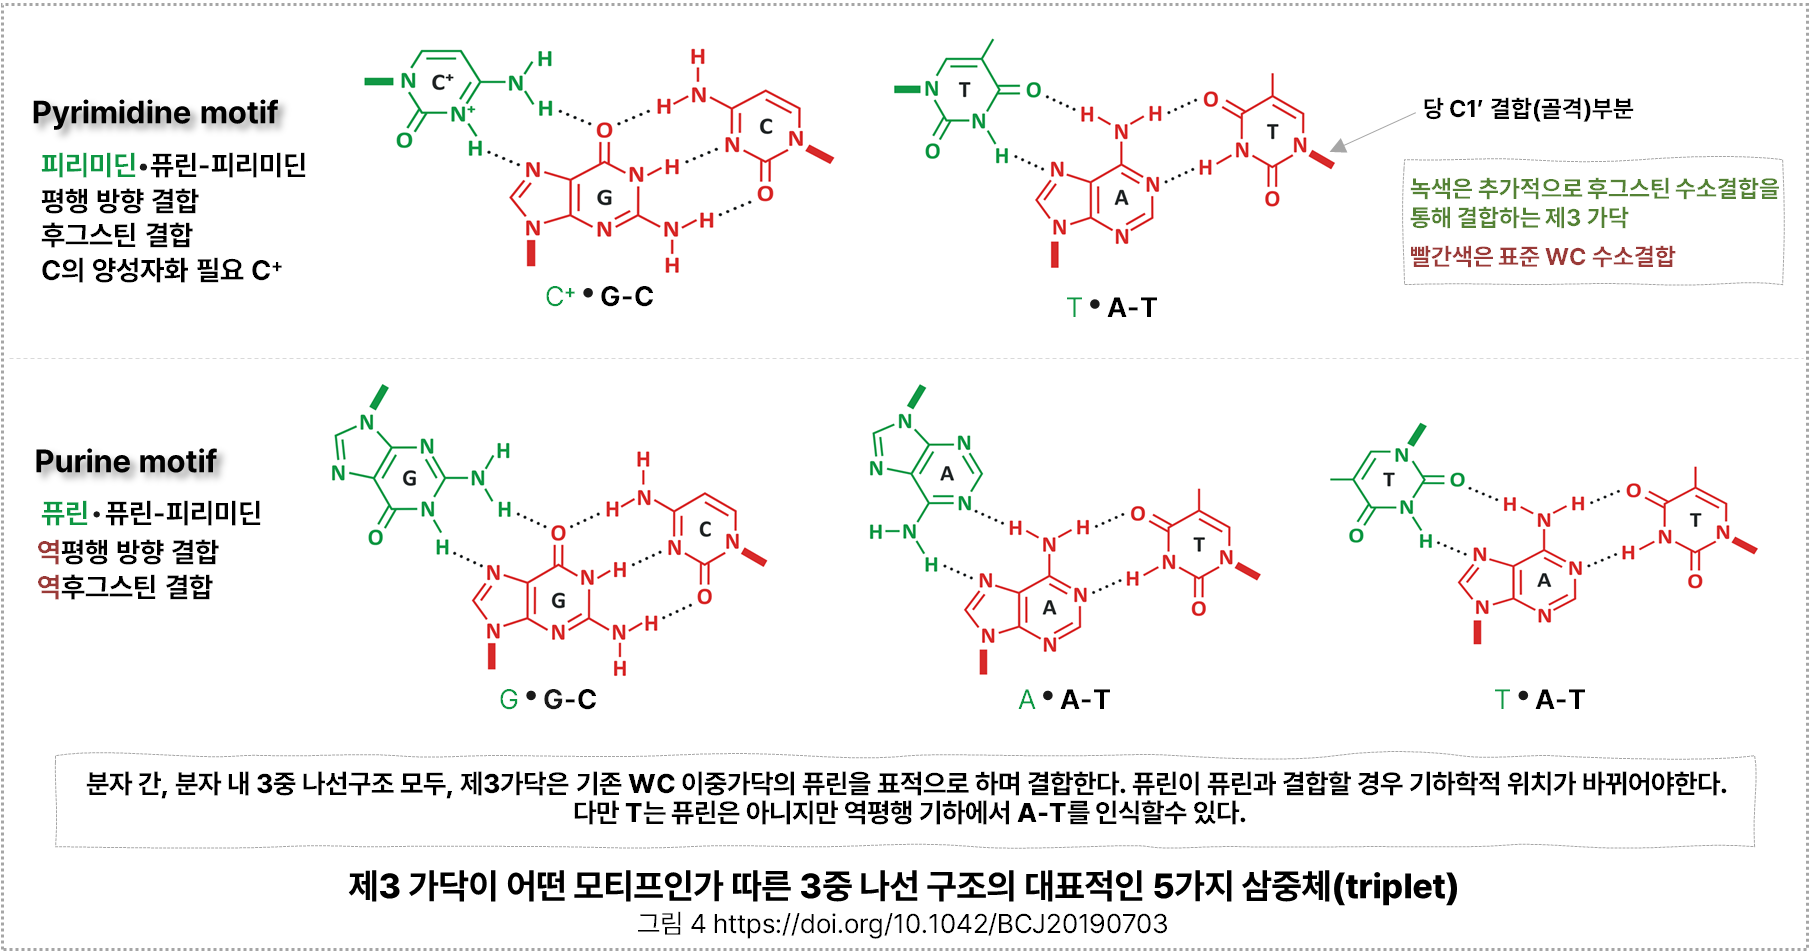
핵산 12: 비정형 DNA 구조(2): 3중 나선 구조(DNA triplex)

DNA가 익숙한 이중나선에서 벗어나 다양한 비정형 구조로 모습을 바꾸려면, 아무 서열에서나 마음대로 접히고 결합할 수 있는 것은 아니다. 집을 리모델링하려 해도 새로운 공간을 만들 수 있는 구조와 조건이 먼저 갖추어져 있어야 하듯이, DNA에도 평범한 이중나선과 다른 구조를 만들 수 있는 기본적인 조건이 필요하다. 그래서 앞글에서는 비정형 DNA 구조들을 본격적으로 살펴보기에 앞서 이러한 조건들을 먼저 알아보았다. 반복서열에서는 복제 과정에서 슬리파지와 같은 염기 미끄럼 현상이 일어나기 쉽고, 특히 역반복 서열은 한 가닥 안에서 서로 상보적인 부분끼리 결합하여 헤어핀을 만들거나, 두 가닥에서 이러한 구조가 함께 형성되어 십자형 구조를 만들 수도 있었다. 그리고 DNA를 구성하는 염기에는 우리가 익숙한 W..